


Содержание
Перейти к:
 Лада Владимировна Шабардина,
Ильзира Амировна Минигалиева,
Влада Андреевна Батенева,
Владислав Александрович Баженов
https://doi.org/10.47470/0869-7922-2026-34-4-254-263
EDN: wmfujw
Перейти к:
Фенол относится к широко распространённым промышленным загрязнителям воздуха рабочей зоны, однако его гематотоксичность и механизмы взаимодействия с бензолом при комбинированной профессиональной экспозиции остаются недостаточно изученными.
Цель настоящего обзора – систематический анализ современных научных данных о токсикокинетике, молекулярных механизмах гематотоксичности фенола и оценка его взаимодействия с бензолом в условиях профессиональной экспозиции.
Проведён поиск публикаций в базах PubMed, Scopus, Web of Science и eLIBRARY.RU в соответствии с руководством PRISMA. Из 136 рассмотренных публикаций для окончательного анализа было отобрано 47 работ.
Фенол способен к локальной биоактивации в костном мозге, для тканей которого характерна высокая активность сульфатаз и миелопероксидазы при низкой активности сульфотрансфераз, что приводит к образованию высокореактивных метаболитов. Эти соединения ингибируют топоизомеразу IIα, нарушают эритроидную дифференцировку, подавляют иммунные клетки и индуцируют окислительный стресс. Выявлено, что генетические полиморфизмы ферментов детоксикации и репарации ДНК могут модулировать индивидуальную восприимчивость к гематотоксическому действию фенола и его метаболитов. Кроме того, при комбинированном воздействии фенол и бензол могут вступать в синергическое взаимодействие.
Заключение. Полученные данные свидетельствуют о необходимости комплексного изучения механизмов токсичности фенола и усовершенствования гигиенических нормативов с учётом комбинированного действия и генетической предрасположенности, а также внедрения расширенного биомониторинга (определение специфических метаболитов в моче и крови, цитогенетический анализ, углублённое обследование групп риска) у работников коксохимических и нефтехимических производств.
Вклад авторов:
Шабардина Л.В., Батенева В.А. – сбор материала, обработка данных, написание текста;
Минигалиева И.А. – концепция и дизайн исследования;
Баженов В.А. – сбор и обработка данных.
Все соавторы – утверждение окончательного варианта статьи, ответственность за целостность всех её частей.
Конфликт интересов. Авторы декларируют отсутствие явных и потенциальных конфликтов интересов в связи с публикацией данной статьи.
Финансирование. Исследование не имело финансовой поддержки.
Поступила: 07 апреля 2026 / Принята к печати: 03 августа 2026 / Опубликована: 16 сентября 2026
Шабардина Л.В., Минигалиева И.А., Батенева В.А., Баженов В.А. Молекулярные механизмы гематотоксичности фенола и его синергическое взаимодействие с бензолом в условиях профессиональной экспозиции (обзор литературы). Токсикологический вестник. 2026;34(4):254-263. https://doi.org/10.47470/0869-7922-2026-34-4-254-263. EDN: wmfujw
Shabardina L.V., Minigalieva I.A., Bateneva V.A., Bazhenov V.A. Molecular mechanisms of phenol hematotoxicity and its synergistic interaction with benzene under occupational exposure conditions (literature review). Toxicological Review. 2026;34(4):254-263. (In Russ.) https://doi.org/10.47470/0869-7922-2026-34-4-254-263. EDN: wmfujw
Фенол и его производные, имеющие широкое промышленное применение как прекурсоры для синтеза различных соединений [1], относятся к числу распространённых ароматических загрязнителей, часто обнаруживаемых в воздухе рабочей зоны коксо- и нефтехимических предприятий, а также производств, связанных с применением органических лаков, красок и растворителей [2–4].
Основной путь поступления фенола в организм работников – ингаляционный, но возможен и перкутанный. После абсорбции соединение легко проникает в системный кровоток. Основной метаболизм происходит в печени: сульфатирование с образованием фенилсульфата, глюкуронизация до глюкуронидов фенола и окисление с помощью ферментов семейства цитохрома P450, ведущее к образованию промежуточных метаболитов, таких как катехол и гидрохинон [5–9]. Образующиеся метаболиты обладают большей гидрофильностью, что способствует их выведению с мочой [10], но в то же время повышенная реакционная способность обусловливает и более выраженные токсические эффекты по сравнению с исходным соединением. Известно также, что фенол и продукты его метаболизма обладают мутагенным потенциалом, поэтому данный токсикант включён в Список приоритетных загрязнителей [11, 12].
Несмотря на накопленные данные о токсичности фенола и его производных в живых системах [13], гематотоксическое действие при профессиональной экспозиции недостаточно изучено. Большинство механистических исследований гематотоксичности выполнено на модели бензольной интоксикации, тогда как изолированный вклад фенола, в частности его миело- и иммунотоксические эффекты, а также взаимодействие с бензолом при совместном поступлении не получили достаточного освещения в научной литературе. Существует и проблема недооценки рисков, связанных с воздействием данных соединений, ввиду их летучести, автоокисления и деградации, что приводит к искажению результатов исследований. Это имеет особую значимость при оценке рисков для здоровья работников коксохимических производств.
Цель исследования – систематический анализ современных научных данных о токсикокинетике, молекулярных механизмах гематотоксичности фенола и оценка характера его взаимодействия с бензолом в условиях профессиональной экспозиции.
Поиск релевантных научных публикаций проводился в соответствии с руководством PRISMA. Публикации отбирались в международных базах данных – PubMed, Scopus, Web of Science, а также в российской базе РИНЦ (eLIBRARY.RU). Глубина поиска составила 44 года (1981–2025 гг.).
Для поиска использовали булевы операторы и ключевые слова: “(phenol OR phenolic compounds) AND (toxicity OR cytotoxicity)”, “(phenol) AND (metabolism OR biotransformation)”, “(phenol) AND (occupational exposure OR air pollution)”, “(phenol) AND (apoptosis OR oxidative stress)”, “(phenol OR phenolic compounds) AND (in vitro OR cytotoxicity)”, “(phenol OR phenolic compounds) AND (animal models)”, “(phenol) AND (health effects OR epidemiology)”. Поиск в русскоязычных базах данных осуществлялся с использованием русскоязычных эквивалентов.
Критерии включения публикации в обзор: исследования на клеточных культурах, лабораторных животных или эпидемиологические исследования, направленные на изучение воздействия фенола или основных его метаболитов, содержащие информацию о токсикокинетике, механизмах токсичности, органах-мишенях или описание корреляции с возникновением патологии или нарушением здоровья.
Критерии исключения: публикации, недоступные в виде полного текста на английском или русском языках, отчёты, тезисы конференций; исследования, посвящённые исключительно аналитическим методам детекции без оценки биологических эффектов; работы, отражающие удаление фенола из сточных вод, без раздела по токсикологии; исследования на растениях или микроорганизмах, не связанные напрямую с токсикологией млекопитающих или человека.
После исключения дубликатов процесс отбора статей проводили первичный скрининг (анализ заголовков и аннотаций), анализ полных текстов, а также списков литературы для выявления дополнительных релевантных публикаций.
Из 136 рассмотренных публикаций для окончательного анализа было отобрано 47 работ.
Метаболизм фенола и его локальная биоактивация в кроветворных тканях
Фенол сам по себе обычно не рассматривается как гематотоксикант, но в составе промышленного аэрозоля он присутствует совместно с бензолом, вовлекаясь таким образом в общий фенольный путь бензольной гематотоксичности, опосредованной активными метаболитами, окислительным стрессом и нарушением эритропоэза [14, 15].
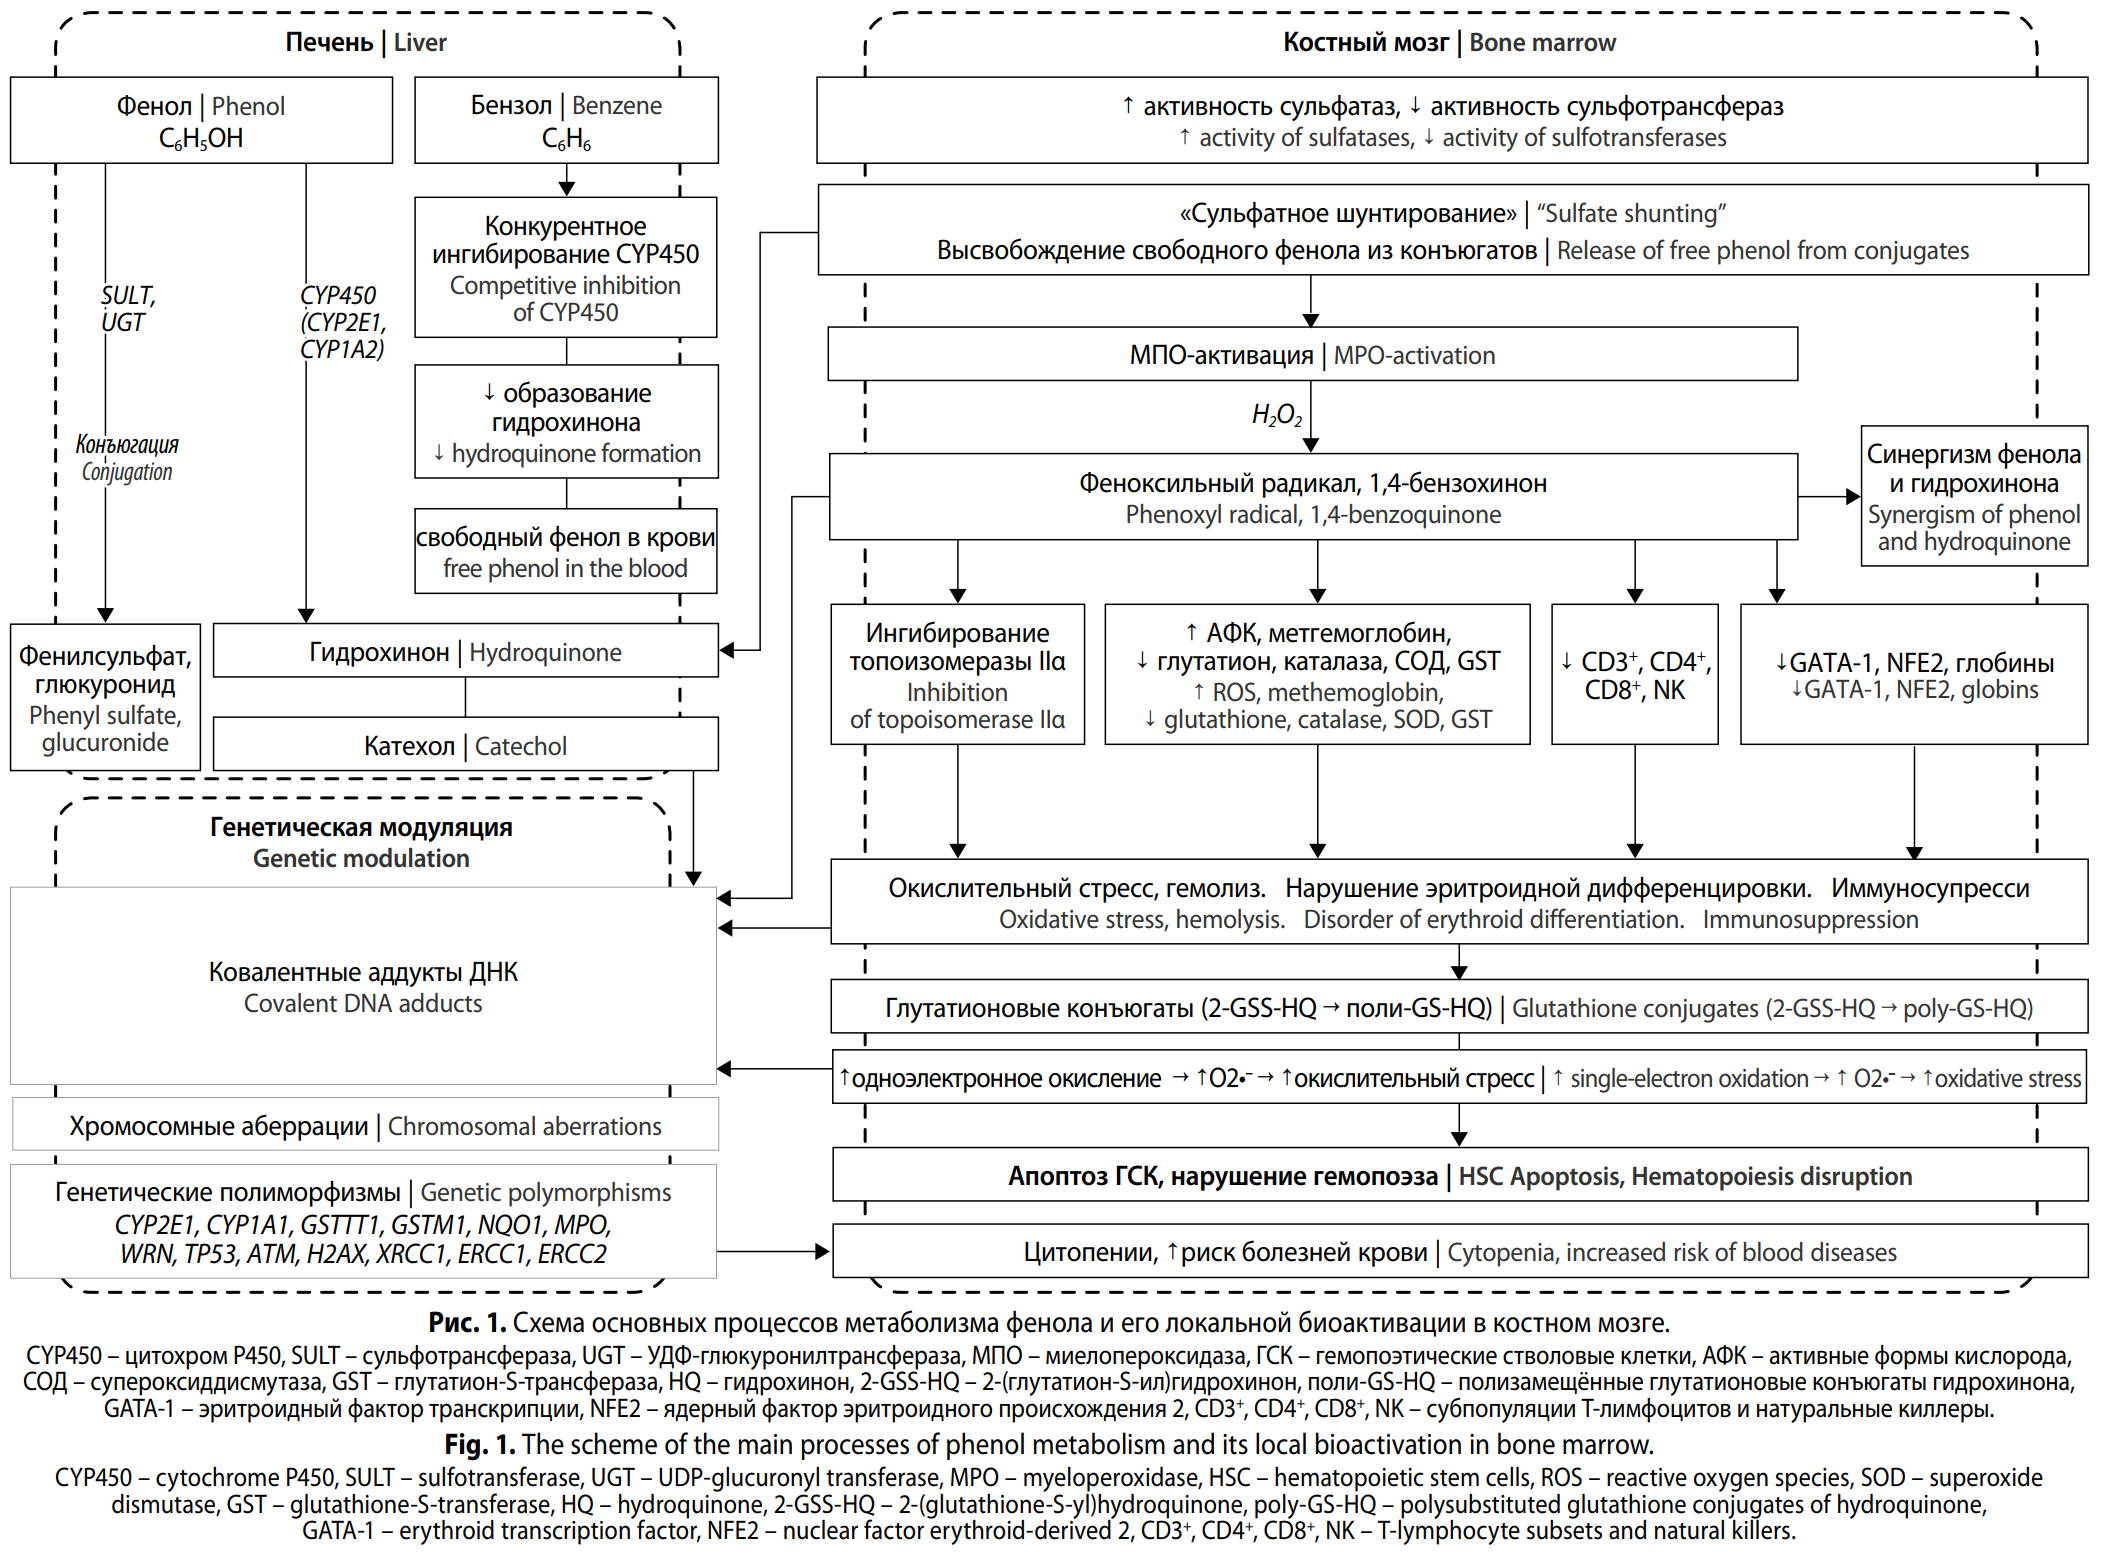
Фенол претерпевает ряд детоксикационных превращений в печени под действием ферментов цитохрома P450, включая сульфатирование и глюкуронирование [16, 17], однако данные метаболические процессы не только обеспечивают элиминацию токсиканта, но и могут увеличивать его биологическую реактивность путём присоединения функциональных групп [18]. Так, часть фенола и его метаболитов (например, гидрохинон и пирокатехин) могут проникать непосредственно в костный мозг.
В костном мозге ввиду высокой активности сульфатаз на фоне низкой активности сульфотрансфераз возникает «сульфатное шунтирование»: конъюгаты гидролизуются, высвобождая свободные фенолы, которые затем окисляются пероксидазами до генотоксичных соединений [19]. Гемопоэтические стволовые клетки (ГСК) обладают высоким соотношением миелопероксидазы (МПО) к детоксикационной NAD(P)H:хинон-оксидоредуктазе 1 (NQO1), что усиливает образование токсичных метаболитов, приводит к апоптозу и нарушению гемопоэза [20, 21]. В миелоидных тканях МПО активирует фенольные соединения высокомиелотоксичных и кластогенных веществ [14, 17], вызывающих окислительный стресс, повреждение ДНК и белков и апоптоз ГСК [18, 22–24].
Основные этапы метаболизма фенола, его локальной биоактивации в костном мозге и синергизма с бензолом представлены на рисунке.
Молекулярные мишени фенола и его метаболитов
Биоактивация фенола при участии пероксидаз вызывает образование реактивных соединений, таких как дифенохиноны, ингибирующих топоизомеразу IIα, что приводит к хромосомным аберрациям. Данные реактивные продукты могут быть нейтрализованы глутатионом, что указывает на участие окислительных механизмов в ингибировании ферментов и кластогенных эффектах [25].
Наряду с прямым ингибированием топоизомеразы IIα фенол и его метаболиты в высоких концентрациях подавляют эритроидную дифференцировку, влияя на транскрипцию эритроид-специфичных генов и вызывая эпигенетические перестройки: на линии клеток K562 (хроническая миелогенная лейкемия человека) было показано, что фенол, гидрохинон, 1,2,4‑бензентриол подавляют гемин‑индуцированную эритроидную дифференцировку, снижая синтез гемоглобина, экспрессию CD71/GPA (трансферринового рецептора) и транскрипцию генов α-, β-, γ‑глобинов, гидроксиметилбилансинтазы, эритроидного фактора транскрипции GATA‑1 и ядерного фактора эритроидного происхождения 2 NF‑E2 [26]. 1,2,4-бензентриол изменяет метилирование ДНК и ацетилирование гистонов в кластерах α- и β-глобиновых генов, нарушая связывание GATA-1 и РНК-полимеразы II [27].
Окисление фенола пероксидазами приводит к образованию 4,4’-дифенола и дифенохинона, образующих ковалентные аддукты с белками, что указывает на путь одноэлектронного окисления и генерацию свободных радикалов [28]. В эритроцитах фенол и катехол индуцируют метгемоглобинемию, истощение глутатиона, генерацию супероксид‑аниона, перекиси водорода и гидроксильных радикалов с последующим гемолизом в результате угнетения антиоксидантных ферментов, включая каталазу, супероксиддисмутазу, глутатион-S-трансферазу (GST), глутатионредуктазу и глюкозо-6-фосфатдегидрогеназу [22].
Воздействие фенола также связано с индукцией экспрессии генов цитохромов P450. Фенол способен значительно повышать экспрессию CYP4F3A на уровне мРНК и белка, причём данный эффект наблюдался в клетках HL-60 как на недифференцированных, так и на дифференцированных формах, а также в эритроидной линии K562 и в нейтрофилах человека ex vivo. [29].
Кроме того, хиноновые метаболиты фенола оказывают прямое подавляющее действие на иммунные клетки [13, 30–32]. Гидрохинон и 1,4-бензохинон ингибируют трансформацию лимфоцитов и нарушают сборку микротрубочек через реакцию Михаэля с SH-группами тубулина [31, 33], что угнетает функцию иммунологического синапса и пролиферативный ответ клеток. В эпидемиологических исследованиях с участием работников, подвергавшихся воздействию фенола, обнаружили снижение числа CD3+, CD4+, CD8+, субпопуляций T-лимфоцитов, угнетение пролиферативного ответа на митоген фитогемагглютинин, а также снижение цитотоксической активности NK-клеток [34].
Генетический полиморфизм как модификатор гематотоксичности фенола
Полиморфизмы генов ферментов детоксикации (I и II фаз) и репарации ДНК играют важную роль в реализации токсичности ксенобиотиков, в том числе определяя индивидуальную восприимчивость к действию фенола. Однако работ, посвящённых этому явлению в контексте изучения фенола и его метаболитов, крайне мало, поэтому чаще ориентируются на данные о бензоле и BTEX (бензол, толуол, этилбензол и ксилолы), где фенол является одним из основных метаболитов.
Фенол и его реакционноспособные метаболиты (гидрохинон, бензохиноны) образуются при окислительном метаболизме бензола, их дальнейшее обезвреживание зависит от ферментов конъюгации II фазы – GST. Нарушение этого этапа ведёт к накоплению данных метаболитов, что индуцирует окислительный стресс, повреждение ДНК в виде двунитевых разрывов (DSB) и апоптоз ГСК. Так, данные, полученные в исследовании Shen M. и соавт., свидетельствуют о том, что гидрохинон индуцирует хромосомную нестабильность и, как следствие, накопление генетических повреждений в ГСК, что способствует развитию болезней крови, в том числе острого миелоидного лейкоза [35].
Эффективность репарации ДНК влияет на исход воздействия фенольных метаболитов. В исследовании на выборке рабочих, экспонированных бензолом (средний уровень 5,4 ppm), выявлены ассоциации полиморфизмов в генах системы репарации DSB с гематотоксичностью. Четыре однонуклеотидных полиморфизма гена хеликазы WRN (rs4987236, rs2725349, rs1800392, rs2725362), кодирующего белок WRN, сочетающий функции АТФ-зависимой 3′-5′ ДНК-хеликазы и экзонуклеазы, обеспечивая стабильность генома, были связаны со снижением общего количества лейкоцитов, гранулоцитов, лимфоцитов (CD4+ и CD8+) и моноцитов у экспонированных рабочих. Гаплотип, включающий три из этих полиморфизмов, ассоциировался со значительным снижением количества лейкоцитов [35]. Полиморфизм гена-супрессора опухолей TP53 rs1042522 был связан со снижением количества лейкоцитов, гранулоцитов, CD4+ T-клеток и B-клеток [35].
В более позднем исследовании Jafari Roshan S. и соавт., проведённом с участием рабочих, экспонированных BTEX (средний уровень бензола 0,75 ppm), установлены дополнительные гены, значимые для реализации гематотоксичности через механизмы репарации DSB. Полиморфизм в промоторной области гена-супрессора опухолей ATM rs228589 ассоциирован с повышенным риском гематологических нарушений: у носителей вариантных генотипов наблюдалось снижение количества эритроцитов. Полиморфизм в промоторе H2AX rs7759 показал сильную ассоциацию со сдвигами клеточного звена крови: у носителей G-аллели наблюдали увеличение количества гранулоцитов и снижение количества лимфоцитов [36].
В систематическом обзоре Ramírez-Lopera V. и соавт. показано, что полиморфизмы генов GSTT1 и GSTM1, кодирующие ферменты семейства глютатион-трансфераз II фазы детоксикации, также демонстрируют устойчивую ассоциацию с гематологическими нарушениями у рабочих, экспонированных бензолом, и, следовательно, его метаболитом фенолу [37]. Эти данные подтверждаются также в исследовании Nourozi M.A. и соавт.: у носителей делеции GSTT1 выявлена тромбоцитопения и установлен повышенный риск гематологических нарушений [38]. Сочетание нулевых генотипов GSTT1 и GSTM1 значимо увеличивало риск гематологических нарушений по сравнению с носителями функциональных аллелей обоих генов [38]. Механизм этих эффектов связан со снижением способности организма к детоксикации: у носителей нулевого генотипа GSTT1 наблюдается значимое снижение экскреции S-фенилмеркаптуровой кислоты (S-PMA), являющейся маркером конъюгации глутатиона с метаболитами бензола и фенола. Данные этого исследования также свидетельствуют о влиянии полиморфизма NQO1 rs1800566 на выведение метаболитов фенольного пути (S-PMA и t,t-муконовой кислоты). Полиморфизмы гена CYP2E1 (rs2031920, rs3813867) связаны с изменением активности соответствующего фермента и, как следствие, с содержанием фенола и гидрохинона в моче, однако эти результаты противоречивы и зависят от уровня экспозиции и этнической принадлежности. Полиморфизм гена МПО MPO rs2071409 ассоциирован со снижением числа лейкоцитов у экспонированных рабочих. Гены репарации ДНК (XRCC1, ERCC1, ERCC2 и др.) хотя и не участвуют напрямую в метаболизме фенола, их полиморфизмы способны влиять на последствия окислительного повреждения ДНК, вызванного фенольными метаболитами [38].
Гематотоксичность фенола существенно зависит от генетического профиля: некоторые варианты в CYP1A1, CYP2E1, GSTT1/GSTM1/GSTP1, NQO1 и генах репарации усиливают образование реактивных фенольных метаболитов и (или) снижают их обезвреживание и репарацию ДНК, повышая риск цитопений и связанных с ними клинических исходов при профессиональной экспозиции (см. таблицу).

Синергизм фенола и бензола
Экспериментальные исследования чаще освещают не прямое взаимодействие бензола и фенола, а взаимодействие фенола с другими фенольными метаболитами бензола, прежде всего гидрохиноном.
Первый этап взаимодействия бензола и фенола проходит в печени. Поскольку бензол и его метаболиты, в том числе фенол, являются субстратами для одних и тех же ферментов цитохрома P450 [39], возможно их конкурентное взаимодействие. При совместном присутствии бензол выступает конкурентным ингибитором окисления фенола [14]. В условиях экспозиции бензолом, особенно в концентрациях, превышающих ПДК, скорость превращения фенола в гидрохинон снижается. Таким образом, нарушается баланс между окислением и конъюгацией фенола: он в меньшей степени подвергается дальнейшему окислению, накапливается в неконъюгированной форме и поступает в системный кровоток [40, 41]. Эти процессы способствуют увеличению поступления фенола непосредственно в костный мозг, где он участвует в последующих синергических взаимодействиях.
Фенол и гидрохинон, поступающие и накапливающиеся в миелоидных тканях, являются субстратами для МПО гранулоцитов и их предшественников [18]. В присутствии перекиси водорода МПО окисляет фенол до феноксильного радикала, который в свою очередь окисляет гидрохинон до семихинона, что ускоряет превращение в 1,4-бензохинон [23]. Экспериментальные исследования in vitro демонстрируют, что добавление фенола к инкубационной смеси с гидрохиноном и МПО увеличивает метаболизм гидрохинона в зависимости от концентраций [22, 23]. Результатом этих процессов является значительное усиление образования 1,4-бензохинона, который обладает генотоксическим и миелотоксическим действием, так как способен ковалентно связываться с белками и ДНК, вызывать хромосомные разрывы и образование микроядер [23, 42]. При этом не только увеличивается выход бензохинона, но и усиливается ковалентное связывание гидрохиноновых метаболитов с белками, что указывает на кросс-активацию – усиление токсичности одного метаболита за счёт другого [22].
Образующийся 1,4-бензохинон также активно взаимодействует с глутатионом, что обычно рассматривается как путь детоксикации, однако в случае с гидрохиноном этот процесс не приводит к полной нейтрализации токсичности. Первичный конъюгат 2-(глутатион-S-ил)гидрохинон окисляется до соответствующего хинона, и цикл окисления и конъюгации продолжается, давая начало полизамещённым конъюгатам: 2,5-ди-(GS)-, 2,6-ди-(GS)-, 2,3,5-три-(GS)-гидрохинону и другим [17, 45]. Эти мультизамещённые тиоэфиры обладают уникальными свойствами: легче подвергаются одноэлектронному окислению по сравнению с гидрохиноном и активнее генерируют супероксидный анион-радикал [17]. Более того, в костном мозге после введения комбинации фенола с гидрохиноном или после экспозиции бензолом обнаруживаются именно такие глутатионовые конъюгаты, а также их цистеинильные и меркаптуровые производные [17, 46]. Истощение глутатиона в условиях окислительного стресса или при конкуренции за предшественники снижает способность клеток удерживать бензохинон в конъюгированной форме и способствует нарастанию окислительного повреждения. Таким образом, конъюгация с глутатионом может создавать широкий спектр вторичных реакционноспособных метаболитов, поддерживающих окислительный стресс и повреждение клеток костного мозга [42].
Экспозиция аэрозолем, содержащим одновременно фенол и бензол, представляет опасность ввиду синергических взаимодействий фенола и фенольных метаболитов бензола [43]. Конкурентное ингибирование окисления фенола бензолом, повышающее доставку свободного фенола в костный мозг, фенол-зависимая стимуляция окисления гидрохинона при участии МПО, двоякая роль глутатиона в детоксикации и образовании полизамещённых тиоэфиров, усиливающая окислительный стресс, – совокупность этих последовательных и взаимосвязанных механизмов опосредует усиление миелотоксичности и генотоксичности, характерных для действия бензола [23, 29, 44, 47].
Совокупность рассмотренных данных позволяет говорить о феноле как об одном из гематотоксичных поллютантов, загрязняющем воздух рабочей зоны. Фенол, традиционно изучаемый только в качестве метаболита бензола, обладает токсическим потенциалом при изолированном воздействии, а также способен усиливать развитие бензол-опосредованных миелотоксических нарушений через органоспецифический метаболизм. Важную роль в реализации данных процессов принадлежит не только концентрации фенола, но и локальным особенностям состава и функционирования ферментов в костном мозге: смещение баланса между биоактивацией и детоксикацией определяет степень и характер гематотоксических эффектов.
Биоактивация фенола в миелоидной ткани, обусловленная смещением соотношения ферментов (высокая активность сульфатаз и МПО при дефиците сульфотрансфераз), приводит к образованию высокореакционных фенольных метаболитов (хиноны, свободные радикалы). Эти метаболиты поражают ключевые молекулярные мишени: они ингибируют топоизомеразу IIα, вызывая хромосомные аберрации, нарушают транскрипцию эритроид-специфичных генов через эпигенетические перестройки и инактивируют антиоксидантные ферменты. Молекулярные повреждения в совокупности индуцируют запуск апоптоза ГСК, подавление эритроидной дифференцировки и общее нарушение гемопоэза, проявляющееся развитием цитопений и повышением риска болезней крови.
Обнаруженные данные о полиморфизмах ряда важных генов (см. таблицу), кодирующих ферменты детоксикации и репарации ДНК, а также белки-супрессоры опухолей, свидетельствуют об актуальности задачи установления ПДК без учёта генетически детерминированной индивидуальной восприимчивости к воздействию химических агентов. Это особенно важно для коксохимических предприятий, характеризующихся комбинированным воздействием фенола и бензола, с учётом доказанной связи хронической бензольной экспозиции с развитием различных гематопатий.
Несмотря на доказанные механизмы гематотоксического действия, которыми обладает фенол, в большинстве исследований авторы продолжают рассматривать данное соединение только в контексте бензольного метаболизма или токсичности BTEX. Однако в условиях профессиональной экспозиции фенол может встречаться и как отдельный поллютант, и в комбинации с бензолом. В условиях такой совместной экспозиции фенол выступает сразу в двух ролях, оказывая гематотоксическое действие изолированно и усиливая бензольную миелотоксичность через МПО-зависимую коактивацию [22, 42], однако эти данные в основном получены при изучении интоксикации бензолом. Современных работ, посвящённых специфическому действию фенола, крайне мало, они фрагментарны. Многие эпидемиологические исследования с участием рабочих коксо- и нефтехимических производств также не разделяют вклады бензола и фенола.
Кроме того, оценка уровня фенола в крови или моче как маркёра экспозиции соединениямм бензольного ряда не является исчерпывающей. Принимая во внимание процессы биоактивации, происходящие в костном мозге, стандартные методы оценки экскреции метаболитов не отражают истинной дозы поллютантов, достигающих органов-мишеней, а также не учитывают в них кумуляцию этих веществ. Таким образом, необходимы разработка и расширение панели исследований при мониторинге производственного химического воздействия. Так, более информативными биомаркёрами могут служить гидрохинон и катехол в моче, а также аддукты белков крови с производными бензохинона.
Заключение
Данные, приведённые в настоящем обзоре, свидетельствуют о том, что фенол обладает рядом гематотоксических эффектов, реализуемых через локальную биоактивацию в миелоидной ткани, ингибирование топоизомеразы IIα, нарушение эритроидной дифференцировки и подавление иммунной функции. В условиях комбинированной с бензолом экспозиции эти эффекты могут усугубляться вследствие синергических метаболических взаимодействий.
Изучение данных литературы выявило малое число современных научных исследований, направленных на изучение механизмов изолированного токсического действия фенола, а также его модулирующего влияния на бензольную гематотоксичность. Данный пробел в совокупности с недостатками современных гигиенических нормативов, основанных на пороговом принципе, обусловливают низкую эффективность оценки риска в контексте профессиональной экспозиции фенолом и бензолом. С учётом генотоксичности фенола и его способности даже в малых дозах вызывать эпигенетические изменения текущие подходы к нормированию могут оказаться недостаточно эффективными.
Существующая система гигиенического нормирования и медицинского контроля может недооценивать риски изолированного действия фенола и его синергизма с бензолом. Практическое применение полученных данных заключается в переходе от оценки только бензола к оценке комбинированного действия смеси; внедрении в программу периодических медицинских осмотров определения специфических метаболитов фенола и бензола; проведении цитогенетического анализа у контактирующих, а также в углублённом обследовании работников групп риска с генетическими полиморфизмами ферментов детоксикации и (или) сдвигами в системе крови; ужесточении критериев мониторинга работников коксохимических и нефтехимических производств.
1. Zeng H., Qiu Z., Domínguez-Huerta A., Hearne Z., Chen Z., Li C.J. An adventure in sustainable cross-coupling of phenols and derivatives via carbon-oxygen bond cleavage. ACS Catal. 2016; 7(1): 510–9. https://doi.org/10.1021/acscatal.6b02964
2. Sun M., Li X., Geng M., Zhou X., Zhang Z., Nie H., et al. Associations of coke oven emission exposure with pulmonary function, blood pressure, blood cell parameters, and biochemical indices in coking workers: a cross-sectional pilot study. Environ. Sci. Process Impacts. 2025; 27(1): 91–103. https://doi.org/10.1039/d4em00306c https://elibrary.ru/ehpdfs
3. Rai A., Chakrabarty J., Dutta S. Phycoremediation of pollutants from coke-oven wastewater using Tetraspora sp. NITD 18 and estimation of macromolecules from spent biomass. J. Water Process Eng. 2021; 39: 101746. https://doi.org/10.1016/j.jwpe.2020.101746 https://elibrary.ru/hskgex
4. Xue J., Ma Y., Feng Z., Ji C., Wang Q. Screening analysis and fine-scale spatial health risks assessment of phenols and PAHs in soils surrounding the coking industry. Environ. Geochem. Health. 2025; 47(7): 281. https://doi.org/10.1007/s10653-025-02598-3 https:/elibrary.ru/arvrcy
5. Sawahata T., Neal R.A. Biotransformation of phenol to hydroquinone and catechol by rat liver microsomes. Mol. Pharmacol. 1983; 23(2): 453–60.
6. Powley M.W., Carlson G.P. Cytochrome P450 isozymes involved in the metabolism of phenol, a benzene metabolite. Toxicol. Lett. 2001; 125(1–3): 117–23. https://doi.org/10.1016/s0378-4274(01)00441-6 https://elibrary.ru/ascccf
7. Tabrett C.A., Coughtrie M.W. Phenol sulfotransferase 1A1 activity in human liver: kinetic properties, interindividual variation and re-evaluation of the suitability of 4-nitrophenol as a probe substrate. Biochem. Pharmacol. 2003; 66(11): 2089–97. https://doi.org/10.1016/s0006-2952(03)00582-3 https://elibrary.ru/etaoov
8. Kolanczyk R.C., Solem L.E., Schmieder P.K., McKim J.M. 3rd. A comparative study of Phase I and II hepatic microsomal biotransformation of phenol in three species of Salmonidae: Hydroquinone, catechol, and phenylglucuronide formation. Fishes. 2024; 9(7): 1–20. https://doi.org/10.3390/fishes9070284 https://elibrary.ru/jrnmoi
9. Shangari N., Chan T.S., O’Brien P.J. Sulfation and glucuronidation of phenols: implications in coenzyme Q metabolism. Methods Enzymol. 2005; 400: 342–59. https://doi.org/10.1016/S0076-6879(05)00020-0 https://elibrary.ru/xscpdm
10. Rothman N., Bechtold W.E., Yin S.N., Dosemeci M., Li G.L., Wang Y.Z., et al. Urinary excretion of phenol, catechol, hydroquinone, and muconic acid by workers occupationally exposed to benzene. Occup. Environ. Med. 1998; 55(10): 705–11. https://doi.org/10.1136/oem.55.10.705
11. EPA. Toxicological Review of Phenol (CAS No. 108-95-2) [IRIS]. Washington; 2002. Available at: https://iris.epa.gov/static/pdfs/0088tr.pdf
12. Michałowicz J., Duda W. Phenols – sources and toxicity. Pol. J. Environ. Stud. 2007; 16(3): 347–62. https://elibrary.ru/mfikyz
13. Louei Monfared A., Jaafari A., Sheibani M.T. Histological and histometrical evidences for phenol immunotoxicity in mice. Comp. Clin. Path. 2012; 23(3): 529–34. https://doi.org/10.1007/s00580-012-1645-9
14. Medinsky M.A., Kenyon E.M., Seaton M.J., Schlosser P.M. Mechanistic considerations in benzene physiological model development. Environ. Health Perspect. 1996; 104(Suppl. 6): 1399–404. https://doi.org/10.1289/ehp.961041399
15. Ross D. Metabolic basis of benzene toxicity. Eur. J. Haematol. Suppl. 1996; 60: 111–8. https://doi.org/10.1111/j.1600-0609.1996.tb01656.x
16. Schlosser P.M., Bond J.A., Medinsky M.A. Benzene and phenol metabolism by mouse and rat liver microsomes. Carcinogenesis. 1993; 14(12): 2477–86. https://doi.org/10.1093/carcin/14.12.2477 https://elibrary.ru/imuhvb
17. Monks T.J., Butterworth M., Lau S.S. The fate of benzene-oxide. Chem. Biol. Interact. 2010; 184(1-2): 201–6. https://doi.org/10.1016/j.cbi.2009.12.025
18. Eastmond D.A., Smith M.T., Ruzo L.O., Ross D. Metabolic activation of phenol by human myeloperoxidase and horseradish peroxidase. Mol. Pharmacol. 1986; 30(6): 674–9.
19. Low L.K., Lambert C.E., Meeks J.R., Naro P.A., Mackerer C.R. Tissue-specific metabolism of benzene in Zymbal gland and other solid tumor target tissues in rats. J. Am. Coll. Toxicol. 1995; 14(1): 40–60. https://doi.org/10.3109/10915819509008680
20. Schattenberg D.G., Stillman W.S., Gruntmeir J.J., Helm K.M., Irons R.D., Ross D. Peroxidase activity in murine and human hematopoietic progenitor cells: potential relevance to benzene-induced toxicity. Mol. Pharmacol. 1994; 46(2): 346–51.
21. Ross D., Siegel D., Schattenberg D.G., Sun X.M., Moran J.L. Cell-specific activation and detoxification of benzene metabolites in mouse and human bone marrow: identification of target cells and a potential role for modulation of apoptosis in benzene toxicity. Environ. Health Perspect. 1996; 104(Suppl. 6): 1177–82. https://doi.org/10.1289/ehp.961041177
22. Eastmond D.A., Smith M.T., Irons R.D. An interaction of benzene metabolites reproduces the myelotoxicity observed with benzene exposure. Toxicol. Appl. Pharmacol. 1987; 91(1): 85–95. https://doi.org/10.1016/0041-008x(87)90196-7
23. Smith M.T., Yager J.W., Steinmetz K.L., Eastmond D.A. Peroxidase-dependent metabolism of benzene’s phenolic metabolites and its potential role in benzene toxicity and carcinogenicity. Environ. Health Perspect. 1989; 82: 23–9. https://doi.org/10.1289/ehp.898223
24. Smith M.T. Overview of benzene-induced aplastic anaemia. Eur. J. Haematol. Suppl. 1996; 60: 107–10. https://doi.org/10.1111/j.1600-0609.1996.tb01655.x
25. Chen H., Eastmond D.A. Topoisomerase inhibition by phenolic metabolites: a potential mechanism for benzene’s clastogenic effects. Carcinogenesis. 1995; 16(10): 2301–7. https://doi.org/10.1093/carcin/16.10.2301 https://elibrary.ru/imvvtx
26. Wu X.R., Xue M., Li X.F., Wang Y., Wang J., Han Q.L., et al. Phenolic metabolites of benzene inhibited the erythroid differentiation of K562 cells. Toxicol. Lett. 2011; 203(3): 190–9. https://doi.org/10.1016/j.toxlet.2011.03.012
27. Yu C.H., Li Y., Zhao X., Yang S.Q., Li L., Cui N.X., et al. Benzene metabolite 1,2,4-benzenetriol changes DNA methylation and histone acetylation of erythroid-specific genes in K562 cells. Arch. Toxicol. 2019; 93(1): 137–47. https://doi.org/10.1007/s00204-018-2333-6 https://elibrary.ru/rhpwdt
28. Bukowska B., Kowalska S. Phenol and catechol induce prehemolytic and hemolytic changes in human erythrocytes. Toxicol. Lett. 2004; 152(1): 73–84. https://doi.org/10.1016/j.toxlet.2004.03.025 https://elibrary.ru/kklmqp
29. Zhao Z., He X., Bi Y., Xia Y., Tao N., Li L., et al. Induction of CYP4F3 by benzene metabolites in human white blood cells in vivo in human promyelocytic leukemic cell lines and ex vivo in human blood neutrophils. Drug Metab. Dispos. 2009; 37(2): 282–91. https://doi.org/10.1124/dmd.108.023192
30. Irons R.D. Benzene-induced myelotoxicity: application of flow cytofluorometry for the evaluation of early proliferative change in bone marrow. Environ. Health Perspect. 1981; 39: 39–49. https://doi.org/10.1289/ehp.813939
31. Das A., Chakrabarty S., Choudhury D., Chakrabarti G. 1,4-Benzoquinone (PBQ) induced toxicity in lung epithelial cells is mediated by the disruption of the microtubule network and activation of caspase-3. Chem. Res. Toxicol. 2010; 23(6): 1054–66. https://doi.org/10.1021/tx1000442 https://elibrary.ru/mzbpgz
32. Snyder R., Dimitriadis E., Guy R., Hu P., Cooper K., Bauer H., et al. Studies on the mechanism of benzene toxicity. Environ. Health Perspect. 1989; 82: 31–5. https://doi.org/10.1289/ehp.898231
33. Shu N., Lorentzen L.G., Davies M.J. Reaction of quinones with proteins: Kinetics of adduct formation, effects on enzymatic activity and protein structure, and potential reversibility of modifications. Free Radic. Biol. Med. 2019; 137: 169–80. https://doi.org/10.1016/j.freeradbiomed.2019.04.026
34. Zeman K., Tchórzewski H., Baj Z., Nowak Z., Majewska E., Pokoca L., et al. The effects of occupational exposure to hydrocarbons on some immune parameters of workers of the phenol division of a petrochemical plant. Pol. J. Occup. Med. 1990; 3(4): 399–407.
35. Shen M., Lan Q., Zhang L., Chanock S., Li G., Vermeulen R., et al. Polymorphisms in genes involved in DNA double-strand break repair pathway and susceptibility to benzene-induced hematotoxicity. Carcinogenesis. 2006; 27(10): 2083–9. https://doi.org/10.1093/carcin/bgl061 https://elibrary.ru/imtapz
36. Jafari Roshan S., Mansoori Y., Hosseini S.R., Sabour D., Daraei A. Genetic variations in ATM and H2AX loci contribute to risk of hematological abnormalities in individuals exposed to BTEX chemicals. J. Clin. Lab. Anal. 2022; 36(4): e24321. https://doi.org/10.1002/jcla.24321 https://elibrary.ru/cmmmjn
37. Ramírez-Lopera V., Uribe-Castro D., Bautista-Amorocho H., Silva-Sayago J.A., Mateus-Sánchez E., Ardila-Barbosa W.Y., et al. The effects of genetic polymorphisms on benzene-exposed workers: A systematic review. Health Sci. Rep. 2021; 4(3): e327. https://doi.org/10.1002/hsr2.327 https://elibrary.ru/odxywj
38. Nourozi M.A., Neghab M., Bazzaz J.T., Nejat S., Mansoori Y., Shahtaheri S.J. Association between polymorphism of GSTP1, GSTT1, GSTM1 and CYP2E1 genes and susceptibility to benzene-induced hematotoxicity. Arch. Toxicol. 2018; 92(6): 1983–90. https://doi.org/10.1007/s00204-017-2104-9 https://elibrary.ru/bzrcid
39. Koop D.R., Laethem C.L., Schnier G.G. Identification of ethanol-inducible P450 isozyme 3a (P450IIE1) as a benzene and phenol hydroxylase. Toxicol. Appl. Pharmacol. 1989; 98(2): 278–8. https://doi.org/10.1016/0041-008x(89)90233-0
40. Medinsky M.A., Kenyon E.M., Schlosser P.M. Benzene: a case study in parent chemical and metabolite interactions. Toxicology. 1995; 105(2-3): 225–33. https://doi.org/10.1016/0300-483x(95)03217-4 https://elibrary.ru/aphdwh
41. Medinsky M.A., Sabourin P.J., Lucier G., Birnbaum L.S., Henderson R.F. A physiological model for simulation of benzene metabolism by rats and mice. Toxicol. Appl. Pharmacol. 1989; 99(2): 193–206. https://doi.org/10.1016/0041-008x(89)90002-1
42. Barale R., Marrazzini A., Betti C., Vangelisti V., Loprieno N., Barrai I. Genotoxicity of two metabolites of benzene: phenol and hydroquinone show strong synergistic effects in vivo. Mutat. Res. 1990; 244(1): 15–20. https://doi.org/10.1016/0165-7992(90)90101-o
43. Legathe A., Hoener B.A., Tozer T.N. Pharmacokinetic interaction between benzene metabolites, phenol and hydroquinone, in B6C3F1 mice. Toxicol. Appl. Pharmacol. 1994; 124(1): 131–8. https://doi.org/10.1006/taap.1994.1016
44. Schlosser M.J., Shurina R.D., Kalf G.F. Metabolism of phenol and hydroquinone to reactive products by macrophage peroxidase or purified prostaglandin H synthase. Environ. Health Perspect. 1989; 82: 229–37. https://doi.org/10.1289/ehp.8982229
45. Lau S.S., Kuhlman C.L., Bratton S.B., Monks T.J. Role of hydroquinone-thiol conjugates in benzene-mediated toxicity. Chem. Biol. Interact. 2010; 184(1–2): 212–7. https://doi.org/10.1016/j.cbi.2009.12.016
46. Bratton S.B., Lau S.S., Monks T.J. Identification of quinol thioethers in bone marrow of hydroquinone/phenol-treated rats and mice and their potential role in benzene-mediated hematotoxicity. Chem. Res. Toxicol. 1997; 10(8): 859–65. https://doi.org/10.1021/tx960208r
47. Subrahmanyam V.V., Doane-Setzer P., Steinmetz K.L., Ross D., Smith M.T. Phenol-induced stimulation of hydroquinone bioactivation in mouse bone marrow in vivo: possible implications in benzene myelotoxicity. Toxicology. 1990; 62(1): 107–16. https://doi.org/10.1016/0300-483x(90)90035-f
Научный сотрудник отдела токсикологии и биопрофилактики ФБУН ЕМНЦ ПОЗРПП Роспотребнадзора, 620014, Екатеринбург, Россия
e-mail: lada.shabardina@mail.ru
Доктор биологических наук, зав. отделом токсикологии и биопрофилактики ФБУН ЕМНЦ ПОЗРПП Роспотребнадзора, 620014, Екатеринбург, Россия
e-mail: ilzira@ymrc.ru
Младший научный сотрудник. отдела токсикологии и биопрофилактики ФБУН ЕМНЦ ПОЗРПП Роспотребнадзора, 620014, Екатеринбург, Россия
e-mail: bateneva@ymrc.ru
Лаборант отдела токсикологии и биопрофилактики ФБУН ЕМНЦ ПОЗРПП Роспотребнадзора, 620014, Екатеринбург, Россия
e-mail: vlabajenoxv@yandex.ru
Шабардина Л.В., Минигалиева И.А., Батенева В.А., Баженов В.А. Молекулярные механизмы гематотоксичности фенола и его синергическое взаимодействие с бензолом в условиях профессиональной экспозиции (обзор литературы). Токсикологический вестник. 2026;34(4):254-263. https://doi.org/10.47470/0869-7922-2026-34-4-254-263. EDN: wmfujw
Shabardina L.V., Minigalieva I.A., Bateneva V.A., Bazhenov V.A. Molecular mechanisms of phenol hematotoxicity and its synergistic interaction with benzene under occupational exposure conditions (literature review). Toxicological Review. 2026;34(4):254-263. (In Russ.) https://doi.org/10.47470/0869-7922-2026-34-4-254-263. EDN: wmfujw
 Послать статью по эл. почте (Необходимо имя пользователя (логин))
Связаться с автором (Необходимо имя пользователя (логин))
121087, г. Москва, Багратионовский проезд, д. 8, кор. 2.
НИАЦ РПОХБВ ФБУН «ФНЦГ им. Ф.Ф. Эрисмана» Роспотребнадзора
тел.: +7 (499) 145-60-23
Эл.почта: rpohbv@fncg.ru
Открытый доступ


